
Комплекс Гольджи
Общие вопросы
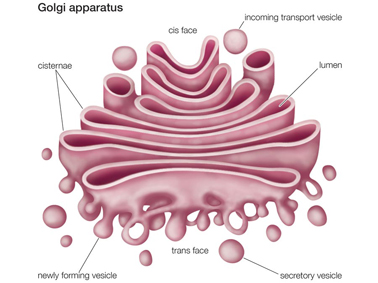
Минимальная единица Гольджи «стопка» состоит из 4-8 цистерн. Клетка млекопитающего обычно содержит от 40 до 100 стопок. Множественные стопки Гольджи латерально (по бокам) взаимосвязаны зависимым от микротрубочек образом, образуя так называемую ленту Гольджи.
Гольджи сильно поляризован. Так, например, везикулы COPI могут формироваться из цистерн Гольджи стека, но не из TGN. Напротив, везикулы, покрытые клатрином, могут образовываться из TGN, но не из более ранних цистерн Гольджи.
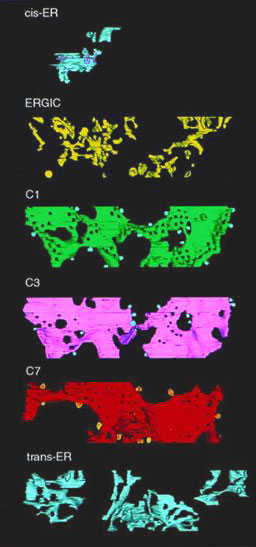
Структура Гольджи
На рисунке – комплект фотографий мембран Гольджи (показаны только 1, 3 и 7 цистерны) [1].
Как видно, комплекс Гольджи – структура полностью контролируемая эндоплазматическим ретикулумом. Он начинается с домена cis-ER и заканчивается доменом trans-ER (рисунок).
Если комплекс Гольджи удалить с помощью лазерной нанохирургии, то он собирается de novo за 12 часов [2].
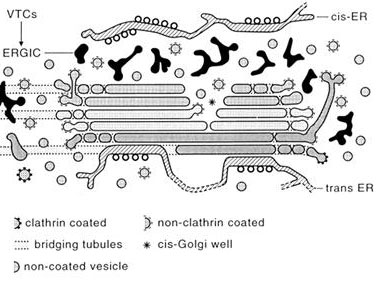
На рисунке показано взаимодействие Гольджи с эндоплазматическим ретикулумом, особенно плотное в области домена trans ER.
С функциональной точки зрения, комплекс Гольджи состоит из двух ярко выраженных частей:
— центральные тонкие стопки, внутри и между которыми аккуратно выставлены расстояния;
— широкие бесформенные ободки вокруг всех тонких цистерн.
Что изображено на рисунке? Внешний «обод» 2-й цистерны (считая с верхней cis-стороны) отделился и сливается с 3-й цистерной стопки?
1. Выбор модели
В литературе описаны многочисленные предполагаемые модели работы комплекса Гольджи. На самом деле — моделей всего две:
1. Цистерны Гольджи стоят на месте.
2. Цистерны Гольджи монотонно движутся.
Эта двойственность хорошо отражена в работе [3].
На какой модели остановиться? Есть убедительные доказательства первой («стационарной») модели. Поэтому в данной работе будем считать, что вопрос по Гольджи закрыт. По крайней мере, до того, как сторонники 2-й модели снова как-то себя проявят.
Вторую модель мы тоже рассмотрим, но в основном как историческую ретроспективу.
1.1. Стационарная модель
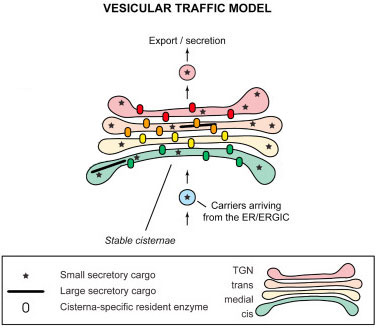
Стационарная модель, известная ранее как «модель везикулярного транспорта», а также в более современных формулировках как «стабильные компартменты» или «модель прогрессии обода» – это основная современная, наиболее хорошо доказанная модель работы комплекса Гольджи. Она предполагает, что:
— тонкие центральные листы стопки цистерн стационарно закреплены и имеют каждая свой уникальный набор ферментов;
— широкий обод («бублик») ведет себя как одна большая, независимая от цистерн везикула. Он формируется на цис-стороне и при помощи клеточных моторов или других механизмов движется к транс-стороне. За 20 минут он проходит всю стопку Гольджи. При типичном составе стопки в 7 цистерн, «обод» находится в контакте с каждой цистерной примерно 3 минуты.
Таким образом, работа Гольджи напоминает массовое проведение диспансеризации, когда кабинеты специалистов расположены последовательно, а весь поток пациентов перемещается более или менее организованно.
Также эта модель включает COPI-зависимую рециркуляцию просочившихся резидентных ферментов Гольджи из поздних цистерн в ранние.
Доказательная база стационарной модели
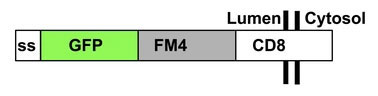
Исследователи создали химерный белок, собрав вместе:
— стандартный трансмембранный белок CD8;
— четыре повтора FM-домена адгезионного белка кадгерина;
— флуоресцентный белок GFP для отслеживания химеры внутри клеток с помощью конфокальной микроскопии [4].
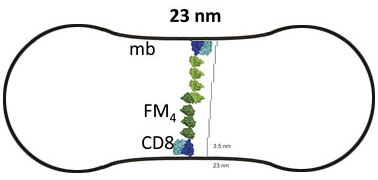
В полости тонкой части цистерн Гольджи химерный белок способен самостоятельно собираться в димеры («скобы»). Длина скобы — 23-25 нм, ровно столько же сколько и толщина тонкой полости.
В присутствии дезагрегирующего препарата – скобы разделяются обратно на мономеры. Ожидалось, что и димеры и мономеры будут двигаться по Гольджи. На самом деле Гольджи обработал эти два типа грузов по-разному:
В обычных условиях
Присутствие димеров не повлияло на общий трафик органеллы. Обычные растворимые грузы собирались по краям цистерн в широких ободках и транспортировались через Гольджи.
Что касается скоб, то они не могли покинуть тонкую часть цистерн. Они не двигались по стеку, а CD8 так и не был зарегистрирован на внешней плазматической мембране.
По наблюдениям исследователей, скобы сохранялись в Гольджи 5-6 часов, значительно дольше 20 минутного трафика через эту органеллу. Затем они подверглись деградации с помощью неизвестного клеточного механизма.
Учитывая полученные результаты, исследователи сделали обоснованный вывод, что тонкие стопки Гольджи не принимают участие в поступательном переносе груза.
При добавлении дезагрегирующего препарата
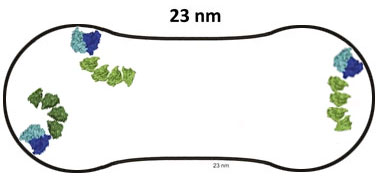
В присутствии дезагрегирующего препарата CD8-химеры проходят секреторный путь и ведут себя как обычные белки.
Димеры разделялись, химерный белок приобретал способность перемещаться по цистерне и в составе «обода» доставлялся на внешнюю плазматическую мембрану, где регистрировалось его присутствие.
1.2. Модель созревания цистерн
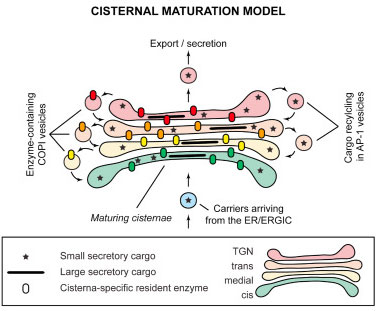
В этой модели цистерны Гольджи рассматривались как неделимые динамические структуры, монотонно движущиеся от цис к транс и созревающие в пути следования.
Рассматриваем эту модель исключительно в историческом контексте. По современным сведениям она, скорее всего не верна:
1. Первоначально господствовала «стационарная модель» с неподвижными цистернами. Но в то время она базировалась на ошибочном суждении, что трафик груза в Гольджи осуществляется везикулами, а не ободом.
2. Как результат — в 1998 г. это утверждение было успешно опровергнуто на примере перемещения крупной молекулы проколлагена [5].
Это наблюдение существенно расширило представления о комплексе Гольджи.
3. Тем не менее, при описании движения проколлагена, видимо, была допущена ошибка: не смотря на небольшой захват электронного микроскопа, был сделан глобальный вывод, что движется не «очень крупный фрагмент цистерны», а движется «вся цистерна».
4. Эта неточность привела к потере интереса к «стационарной модели» в пользу «модели созревания цистерн». Тенденция сохранялась до 2013 года, когда были получены новые данные.
2. Учет потерь груза и толщины мембран
Два важных наблюдения сформулированы в исследовании [6], которые необходимо будет учитывать при построении любой модели работы комплекса Гольджи:
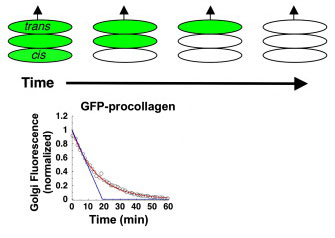
Учет потерь груза
В эксперименте авторы маркировали коллаген флуоресцентным зеленым и отслеживали интенсивность свечения района локализации Гольджи в течение часа.
Также они приостановили отправку проколлагена (зеленый) из ретикулума. В соответствии с текущими представлениями – интенсивность свечения района Гольджи должна снижаться по линейному закону по мере продвижения остатков груза по стеку. Через 20 минут интенсивность свечения должна быть нулевой (прямая на рисунке). Однако по факту интенсивность свечения снижалась по экспоненте (рисунок).
Авторы предположили, что из всех цистерн идет постоянная утечка продукта, которую необходимо будет учитывать.
Не обязательно. Экспонента может означать, что не все везикулы, генерируемые ретикулумом, встраиваются в цистерны Гольджи. Возможно, часть везикул плавает в районе Гольджи, давая флуоресценцию, затем покидает район, и где-то в других местах обрабатывается или деградирует.
Учет толщины мембран
Пытаясь объяснить полученные результаты, исследователи обнаружили еще один эффект, который, кажется, нужно будет учитывать при построении модели работы Гольджи.
Дело в том, что по наблюдению авторов, разные по длине липиды в составе мембран не плавают в виде смеси, а самостоятельно агрегируются в однотипные регионы. Например, эксперименты in vitro на модельных мембранах ясно указывают на способность сфинголипидов и стеринов фазово разделяться от ненасыщенных фосфолипидов.
Более того, белки с разной длиной трансмембранного домена будут иметь тенденцию к закреплению на мембране подходящей, соответствующей толщины.
При этом нужно учитывать следующее:
1. Толщина мембран меняется вдоль секреторного пути. Мембраны ER и цис-Гольджи богаты фосфолипидами, тогда как сфинголипидами и стеринами обогащены транс-Гольджи и более поздние компартменты. Цис сторона Гольджи по липидному составу подобна ER. Транс — содержит мембрану, которая напоминает по составу плазматическую мембрану (PM).
2. Трансмембранные домены белков (TMD) используют эту ситуацию. Существуют различия в длине TMD белков секреторного пути. Белки, локализованные в ER, имеют самые короткие TMD, и длина постепенно увеличивается вдоль оси секреторного пути (ER — комплекс Гольджи — TGN – эндосомы — PM), при этом белки PM, имеют самые длинные TMD.
3. Созревание в цистернах
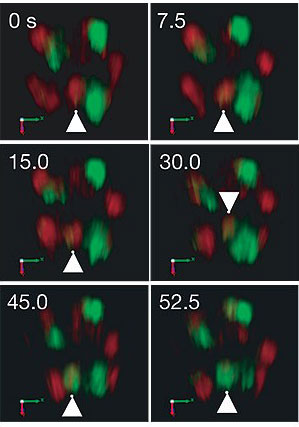
Помимо постоянных резидентов, цистерны Гольджи могут обрабатываться волнами приходящих ферментов. Так [7] провели наблюдение за одним из видов дрожжей, у которого цистерны Гольджи не фиксированы в стопку, а распределены по цитоплазме. На фотографии видно, что два разных набора ферментов (люминесцентный красный и зеленый) сменяются в одной и той же цистерне (выделенной стрелкой) в течение периода порядка 1 минуты создавая «волны».
4. Белки Гольджи
Функционирование Гольджи обеспечивается многочисленными классами белков:
— матричные белки, определяющие структуру Гольджи (гигантин, GRASP65, GM130);
— связанные с мембраной малые ГТФазы, например, семейства Rab и Arf;
— Rab-ассоциированные факторы в основном принадлежат к двум классам: golgins (включая такие члены, как GM130, гигантин, p115, EEA1); и большие MTC, такие как TRAPP, COG, экзоциста, CORVET, HOPS, комплексы TRAPP, COG и GARP — локализуются на мембранах Гольджи и участвуют в прямом или косвенном связывании и стыковке транспортных носителей внутри Гольджи;
— белки SNARE отвечают за специфическое слияние мембран;
— VSV-G (модельный однопроходный грузовой белок типа I);
— семейства карго-рецепторов p24.