
Гуморальный иммунный ответ
Общая схема
Гуморальный вариант иммунного ответа направлен на перехват растворимых компонентов патогенов (токсинов, аллергенов, химиопрепаратов), бактерий и их фрагментов, а также крупных инвазивных патогенов — гельминтов, которые не могут быть фагоцитированы макрофагами из-за своих размеров.
Общий принцип гуморального иммунитета:
1. Все события разворачиваются в лимфоузле. Сюда из межклеточной жидкости с током лимфы поступают продукты жизнедеятельности бактерий, фрагменты бактерий. Здесь же обитают макрофаги, хелперы Тх0, В-лимфоциты.
2. Любые два наивных Тх0-хелпера — абсолютно идентичные клоны и отличаются только рисунком (шаблоном) на своем TCR-рецепторе.
Аминокислоты в цепи белка будем обозначать русскими буквами, например, Л – лейцин. Пусть у одного Тх0 в активном центре TCR-рецептора последовательность аминокислот АСПАРАГУС, а у другого – МЕТАМОРФОЗ.
Причем у первого хелпера примерно 100 000 TCR-рецепторов, и на каждом — последовательность АСПАРАГУС. У второго также примерно 100 000 TCR-рецепторов, и на каждом соответственно — МЕТАМОРФОЗ.
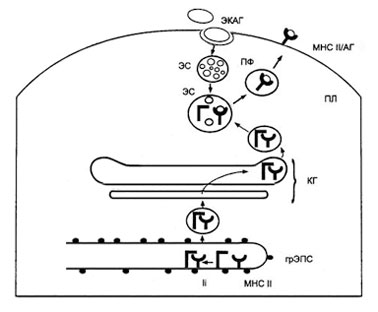
3. Все антигенпредставляющие клетки организма (АПК) поглощают бактерий и их фрагменты, разрушают их белки до небольших пептидов и выставляют бактериальные пептиды снаружи на проверку хелперам.
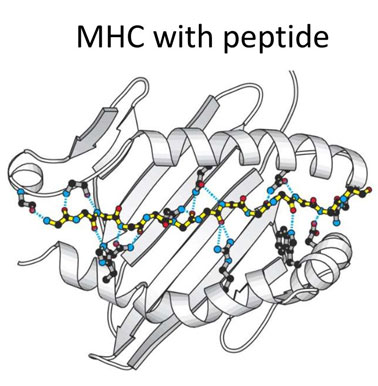
Пептиды выставляются в рецепторах-контейнерах МНС-2. Предположим, у бактерии имеется 15 000 белков по 300 аминокислот каждый. Это цепь 4 500 000 пунктов. В контейнер МНС-2 входит приблизительно 10 пунктов. Т.е. нужно 450 000 контейнеров чтобы разместить только одну бактерию. Клетка действительно столько выставляет?
4. Тх0 по очереди прикладывают свой шаблон к выставленным на проверку пептидам.
Для установления контакта рельеф шаблона должен совпадать с рельефом целевого бактериального пептида. Это необходимо, т.к. нековалентные связи слабы и на расстоянии из-за неплотного прилегания не будут действовать. Прочность такого контакта характеризуется афинностью и авидностью.
Тх0 прошли обучение в тимусе и поэтому их шаблоны не связываются с пептидами клеток собственного организма. С бактериальными же пептидами отдельные Тх0 свяжутся.
Как и в клеточном иммунитете, хелпер должен связаться с АПК через 200-300 TCR-рецепторов?
Такому хелперу АПК придает активационный импульс, Тх0 дифференцируется в Тх2.
5. Здесь же в лимфоузле, В-лимфоциты пытаются ловить бактерий на свой уникальный BCR-рецептор. Как и у хелперов, у всех В-лимфоцитов разный рисунок на BCR-рецепторе. Некоторым удастся подцепить бактерию за один из ее внешних элементов. Такой В-лимфоцит переварит бактерию и выставит для хелпера уже весь букет ее внутренних белков в контейнерах МНС-2.
6. Таким образом, в одном лимфоузле находятся две клетки, реагирующие на одну и ту же бактерию – Тх2 и В-лимфоцит.
При этом, Тх2 ищет себе исполнителя как раз из числа В-лимфоцитов. Тх2 проверяет своим TCR-рецептором контейнеры МНС-2 В-лимфоцитов и находит нужного, переварившего ту же бактерию.
Тх2 активирует такого В-лимфоцита к выпуску антител.
7. В-лимфоцит выпускает однотипные антитела аналогичные своему BCR-рецептору.
8. Антитела попадают в циркуляцию и маркируют всех бактерий одного, распознанного рецепторами вида.
9. Связавшиеся с бактерией антитела делают ее хорошо заметной для всех участников иммунного ответа: макрофагов, белков системы комплимента, и т.д.
10. В-лимфоциты продуцируют антитела, а Т-хелперы обеспечивают пролиферацию (деление) В-лимфоцитов.
I. Формирование популяции хелперов
Как при обучении в тимусе, так и по выходу из него наивные хелперы гуморального и клеточного иммунитета неразличимы. Это одни и те же клетки – Тх0 (сведения по их росту и развитию см. в разделе по клеточному иммунитету).
II. Формирование популяции В-лимфоцитов
1. Строение В-лимфоцитов
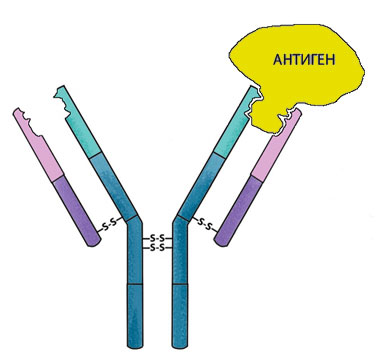
В-лимфоцит – это клетка с Y-образным рецептором иммуноглобулина (Ig).
Плечи Ig-рецептора напоминают прищепку, немного подпружинены, могут раздвигаться и снова защелкиваться при ударе об антиген. Весь верхний участок иммуноглобулина – вариабельный. Если антиген не выпуклый, а вогнутый – может ли иммуноглобулин связаться с ним своими торцевой и внешней сторонами?
Любые два В-лимфоцита — абсолютно идентичные клоны и отличаются только рисунком (шаблоном) на Ig-рецепторе.
У каждого Ig-рецептора два активных центра: на тяжелой и легкой цепи (на верхней и нижней частях «прищепки»).
Аминокислоты в цепи белка будем обозначать русскими буквами, например, Л – лейцин. Последовательности аминокислот в активных центрах Ig-рецепторов могут быть произвольными. Например, у одного из двух В-лимфоцитов, на паре активных центров Ig-рецептора последовательности аминокислот АСПАРАГУС-МЕТАМОРФОЗ. У другого — СТОМАТОЛОГ-ТЕРМИТНИК.
Причем у первого В-лимфоцита примерно 100 000 Ig-рецепторов, и на каждом — последовательность АСПАРАГУС-МЕТАМОРФОЗ. У второго тоже примерно 100 000 Ig-рецепторов, и на каждом соответственно — СТОМАТОЛОГ-ТЕРМИТНИК.
Что касается правой и левой «прищепок» Ig-рецептора – то они абсолютно идентичны.
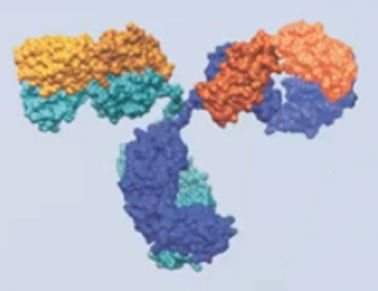
Как отмечалось ранее, TCR-рецепторы как хелперов, так и цитотоксических лимфоцитов имеют конфигурационные ограничения и способны читать только пептиды, вложенные в контейнеры МНС-1 и МНС-2. В-лимфоциты не имеют таких ограничений. Их Ig-рецепторы способны связаться с любыми элементами, находящимися в циркуляции: полисахаридами бактерий, токсичными молекулами, белками и фрагментами белков.
На рисунке — гамма-глобулин. Визуально это все же не совсем прищепка.
2. Рост и развитие В-лимфоцитов
1. В костном мозге группа активных стволовых лимфоидных клеток ежедневно выпускает новые В-лимфоциты.
2. У каждого нового В-лимфоцита в участок ДНК, содержащий вариабельный район Ig-рецептора, раз и навсегда встраивается случайным образом сгенерированный фрагмент. Процедура следующая:
ДНК человека содержит примерно 50 вариантов V-участка, 30 вариантов D-участка и 6 вариантов J-участка.
Случайным образом выбираются: один из 50 вариантов V-участка, один из 30 вариантов D-участка и один из 6 вариантов J-участка. Участки состыковываются в уникальную по составу VDJ-цепь (соматическая рекомбинация).
Пример соматической рекомбинации. В непрерывную последовательность ДНК соединяются по одному сегменту из V-, D- и J-областей. При этом в каждом отдельном B-лимфоците возникает уникальная комбинация VDJ для тяжёлой цепи и VJ — для лёгкой цепи.
Уже после соматической рекомбинации разнообразие В-лимфоцитов достигает 50V*30D*6J*50V*6J = около 3×10**6 вариантов.
3. Для усиления этого разнообразия добавляются еще два механизма — неточность связи V-D-J и гипермутагенез. Или, другими словами, ошибки при сборке этого участка ДНК приветствуются.
На этом этапе разнообразие В-лимфоцитов достигает 10**16 вариантов.
3. Обучение В-лимфоцитов
Ig-рецепторы В-лимфоцитов (BCR-рецепторы) не должны связываться с белками собственного организма. Это обеспечивается дополнительной селекцией в костном мозге: В-лимфоциты, экспрессирующие иммуноглобулиновые рецепторы к своим собственным антигенам, погибают в результате запуска механизма апоптоза.
4. Поступление В-лимфоцитов в циркуляцию
В-клетки, прошедшие полную программу развития в костном мозге попадают в циркуляцию, заселяют B-зоны лимфоидных органов и лимфоидную ткань, ассоциированную со слизистыми покровами. Хоминг лимфоцитов к соответствующим зонам определяется их поверхностными адгезивными молекулами (селектинами, интегринами, адгезинами суперсемейства иммуноглобулинов, муциноподобными молекулами).
III. Гуморальный иммунный ответ на бактериальную инфекцию
1. Бактерии проникли в ткань
Бактерии через повреждение кожи попали в питательную среду — межклеточную жидкость — и активно размножаются.
Гуморального ответа не будет, макрофаги и так справляются. Какое обстоятельство вынуждает подключиться гуморальной ветви иммунитета? Просто переизбыток патогенна, приводящий к замыканию 200-300 TCR-рецепторов хелпера одновременно на рецепторы АПК?
2. Хелпер Тх0 обнаружил бактерий
1. Макрофаги лимфоузла активно ловят бактерий и их фрагменты на универсальные ТОЛЛ-рецепторы, переваривают (без участия протеосом) и выставляют фрагменты белков (пептиды) в контейнере МНС-2 на свои внешние мембраны.
Кроме этого, в лимфоузел спустились представители еще одного вида АПК – дендритные клетки (ДК). Они собирали антигены на переферии и также разместили их на внешней мембране в контейнерах МНС-2.
2. В лимфоузлах много наивных хелперов Тх0. Они активно перемещаются, проверяя содержимое МНС-2 контейнеров своим TCR-рецептором на предмет комплементарного совпадения. Как отмечалось, у каждого хелпера свой индивидуальный рисунок на TCR-рецепторе и лишь единицы из всей массы хелперов подойдут как ключ к замку к бактериальным пептидам, выставленным на проверку макрофагами и ДК.
3. АПК направит эффективно связавшегося с ней хелпера либо по клеточному либо по гуморальному пути развития. Делает это АПК на основании внутренней информации об антигене, который ей удалось захватить. В нашем случае, АПК дифференцирует Тх0 в Тх2.
4. Активированный таким образом хелпер Тх2 самостоятельно делится (порядка 1000 делений для усиления эффекта).
3. В-лимфоцит обнаружил бактерий
Покоящиеся В-лимфоциты, в основном, находятся в лимфоузлах. В отличие от T-лимфоцитов, они обладают слабой способностью к рециркуляции.
Как отмечалось ранее, В-лимфоциты пытаются ловить бактерий на индивидуальные BCR-рецепторы.
В-лимфоцит, которому удалось зацепиться BCR-рецептором за поверхностные элементы бактерии, поглощает ее (рецепторно-опосредованный эндоцитоз). Затем переваривает (без участия протеосом) и выставляет фрагменты ее белков (пептиды) в контейнерах МНС-2 на свою внешнюю мембрану.
4. Хелпер Тх2 находит исполнителя среди В-лимфоцитов
1. Хелперы Тх2 активны т.к. встретили антиген и ищут себе исполнителя, проверяя своими TCR-рецепторами все МНС-2 В-лимфоцитов данного лимфоузла.
Если TCR-рецептор хелпера свяжется с антигеном в контейнере МНС-2 В-лимфоцита, то данному В-лимфоциту хелпер доверяет, т.к. тот настроен на тот же антиген, что и сам хелпер.
2. Для активации найденного В-лимфоцита, Тх2 начинает выделять цитокины:
— интерлейкин-2 (ИЛ-2);
— ИЛ-4 — активация В-лимфоцита, пролиферация Тх2;
— ИЛ-5 — для активного деления В-лимфоцитов;
— ИЛ-6 — дифференцирует В-лимфоцитов в плазмоциты;
— Гама-ИФН — привлекает в регион и активирует макрофагов;
— ИЛ-10 — подавляет продукцию основного цитокина Тх1 — ИФН-g — ослабляя конкурирующую клеточную ветвь иммунного ответа.
3. Активированный Тх2 начинает выделять ИЛ-4, который обладает пролиферативным действием для собственной популяции. С этого момента начинается формирование клона активированных Тх2, все клетки которого будут иметь одинаковый TCR-рецептор. Клон формируется в течение нескольких часов. При этом пролиферация вновь появляющихся клеток поддерживается интерлейкинами, которые постоянно продуцируются возникающими потомками. Сколько делений?
4. Под действием цитокинов хелпера, В-клетка в лимфоузле также делится, выполняет порядка 1000 делений (для усиления эффекта). Полученные клоны частично дифференцируются в двух направлениях: на В-лимфоциты памяти и на плазмобласты – предшественники плазматических клеток.
5. Плазмобласты способны к делению. Они делятся со скоростью примерно одно деление в 10 часов, производя около девяти делений. Это через 4 суток приводит к появлению общей популяции примерно из 500 клеток на каждый исходный плазмобласт.
6. Плазмобласты способны к перемещению по крови в органы иммунной системы. Первые плазмобласты остаются в лимфоузле. Остальные — мигрируют в селезенку, в красный костный мозг и слизистые оболочки.
7. В органах иммунной системы плазмобласты оседают и окончательно дифференцируются в плазмоциты.
Большинство зрелых плазмоцитов не рециркулирует в крови.
8. Осевшие плазмоциты синтезирует антитела со скоростью, примерно 2000 молекул в секунду.
При первичном иммунном ответе в первые трое суток после попадания во внутреннюю среду организма антигена количество специфичных по отношению к нему антител нарастает медленно. Это можно объяснить тем, что определенное время уходит на процессинг антигена, образование клонов Т-хелперов, а затем клонов В-лимфоцитов. Следующие 7 суток происходит быстрое нарастание количества антител. К 10 суткам количество антител достигает максимума и сохраняется на этом уровне последующие 15-20 суток. Затем количество антител постепенно уменьшается и через 2-3 месяца антител, специфичных к данному конкретному антигену, в организме практически не остается.
5. Антитела
Фактически плазмоцит массово выпускает те же самые Y-образные BCR-рецепторы, на которые раньше В-лимфоциту удалось поймать антиген. Но теперь это не рецепторы, а свободно плавающие антитела.
Различают пять классов антител, отличающихся строением тяжелых цепей. Из них три основных — IgM, IgA, IgG и два редких – IgD, IgE. Как плазмоцит определяет, какому классу отдать предпочтение?
***
Сколько разных антител выработается для одной бактерии?
На любом чужеродном белке найдется несколько уникальных последовательностей аминокислот, по которым его можно отличить от собственных белков организма. Такие участки называют антигенной детерминантой или эпитопом. У большинства белковых антигенов такую детерминанту образует последовательность из 4-8 аминокислот, а у полисахаридных антигенов — 3-6 гексозных (моносахаридных) остатков.
Важно – число эпитопов фиксированное, а не бесконечное. У бактерии тифа всего 10 эпитопов. Если бактерия тифа попадет в организм человека, то на белках бактерии В-лимфоциты найдут всего 10 уникальных участков. А Тх2 найдут, видимо, еще больше. Ведь они проверили не только поверхностные белки, а вообще все белки бактерии?
Все остальные сочетания аминокислот:
— либо встречаются в белках и тифа и человека, их нельзя атаковать, чтоб не повредить свой собственный организм;
— либо содержат малоконтрастные повторы, не вызывающие иммунных реакций.
Соответственно, организм выработает примерно 10 видов антител.
6. Макрофаги поглощают объекты, помеченные антителами
В нижней части все антитела имеют универсальный FcR-разъем для макрофагов и белков системы комплимента.
Благодаря этому, связавшиеся с бактерией антитела делают ее хорошо заметной для всех участников иммунного ответа.