
Доиммунные механизмы
Значительную часть микроорганизмов инактивируют именно доиммунные механизмы резистентности к инфекциям, не доводя процесс до развития иммунного воспаления с участием лимфоцитов.
И лишь те инфекции и те дозы инфектов, с которыми не справляются доиммунные механизмы резистентности, достаются лимфоцитам. При этом лимфоцитарный ответ невозможен без процессов доиммунного воспаления.
Доиммунные защитные реакции в отношении Аг направлены на то, чтобы не пустить Аг глубже покровов. Локальный отёк препятствует всасыванию Аг в системную циркуляцию.
Проникший в покровы патоген сорбируют и поглощают эндоцитозом ДК, фагоцитируют макрофаги. И те, и другие — профессиональные АПК, но только ДК обладают особыми способностями — мигрируют из покровов (вместе с Аг) в региональные лимфоидные органы.
В механизмах доиммунной сопротивляемости организма важнейшую роль играют:
— первичные рецепторы для патогенов (белки-опсонины и т.п.);
— система комплемента;
— эндогенные пептиды-антибиотики;
— интерфероны;
— фагоцитоз макрофагами (см. общий раздел, здесь не рассматривается).
1.1. Первичные рецепторы для патогенов (белки-опсонины и т.п.)
Белки-опсонины связываются с бактериями и делают бактерий заметными для фагоцитов и системы комплимента.
На поверхности микроорганизмов присутствуют повторяющиеся молекулярные углеводные и липидные структуры, которых в подавляющем большинстве случаев нет на клетках организма хозяина. Особые рецепторы (PRR, Pattern Recognition Receptors) распознают этот «узор» на поверхности патогена.
На сегодня известно 2 типа PRR — растворимые и мембранные. Растворимые рецепторы для патогенов — белки сыворотки крови, синтезируемые печенью: липополисахаридсвязывающий белок (LBP — Lipopolysaccharide Binding Protein), компонент системы комплемента C1q, белки острой фазы (СМЛ и СРБ).
Они непосредственно связывают микробные продукты в жидких средах организма и обеспечивают возможность поглощения этих продуктов фагоцитами, т.е. являются опсонинами (от лат. opsonen — делающий вкусным). Кроме этого, некоторые из них вызывают активацию системы комплемента.
— СРБ, связывая фосфорилхолин клеточных стенок ряда бактерий и одноклеточных грибов, опсонизирует их и активирует систему комплемента по классическому пути.
— СМЛ, имея сродство к остаткам маннозы, экспонированным на поверхности многих микробных клеток, запускает лектиновый путь активации комплемента.
— Белки сурфактанта лёгких — SP-A и SP-D принадлежат к тому же молекулярному семейству коллектинов, что и СМЛ. Они, вероятно, имеют значение в опсонизации лёгочного патогена — одноклеточного гриба Pneumocystis carinii.
1.2. Система комплемента
Комплемент — система белков, включающая около 20 взаимодействующих компонентов: С1, С2, …, С9, фактор В, фактор D и ряд регуляторных белков.
Белки системы комплемента неактивны и постоянно присутствуют в крови и тканевой жидкости. Распознав стенку бактерий, они активируются, вызывая каскад порообразующих реакций.
Белки комплемента синтезируются в основном в печени.
Активация комплемента может происходить по трём путям: альтернативному, классическому и лектиновому. Все три пути идентичны, отличаются только способом размещения белка С5b на мембране патогенна.
Классический путь
Активируется только на поверхности бактерий, помеченных антителами (иммуноглобулинами). Для инициации этого пути достаточно одной молекулы IgM или нескольких IgG.
Далее следует каскад реакций. При этом считается, что на каждом этапе очередной элемент комплимента расщепляется на два фрагмента. Как правило, больший из фрагментов (обозначается буквой b) остается на мембране клетки-мишени, а меньший (а) – уходит в раствор:
1. С1 – это комплекс из 5 молекул (одна C1q, две C1r, две C1s). C1q-участок связывается с Fc-участком IgМ или IgG, связывается с поверхностью клетки-мишени, меняет конформацию, активирует C1r, а та расщепляет C1s.
2. С1 расщепляет С4. С4=С4а+С4b. С4а уходит в раствор, С4b ковалентно связывается с поверхностью клетки-мишени.
3. С4b связывается с С2. С1 расщепляет связанную С2. С2=С2а+С2b. С2b уходит в раствор.
4. С4b+С2а=С4bС2а (это С3-конвертаза), продолжает оставаться на поверхности клетки-мишени.
5. С3-конвертаза расщепляет С3 (С3=С3а+С3b). С3а уходит в раствор, С3b остается на клетке-мишени.
На этом этапе происходит усиление сигнала. Деятельность одной единицы С3-конвертазы приводит к появлению около 1000 пор.
6. С3-конвертаза + С3b = С4bС2аС3b (это С5-конвертаза).
7. С5-конвертаза расщепляет С5 (С5=C5a+C5b). С5а уходит в раствор, С5b остается связанный с клеткой-мишенью.
Альтернативный путь
Для альтернативного пути не нужны антитела. Компоненты альтернативного пути срабатывают встретив на мембране некоторых микроорганизмов типичные для бактерий и вирусов элементы — полисахариды и липополисахариды.
В альтернативном пути дополнительно нужны белки-факторы В, D, P. Запускается механизм следующим образом:
1. Гидролиз C3 прямо на поверхности патогена (С3=С3а+С3b). С3а уходит в раствор, С3b ковалентно связывается с поверхностью клетки-мишени.
2. С3b + фактор В = С3bВ.
3. Связанный фактор В расщепляется фактором D. В=Ва+Вb. Ва уходит в раствор, С3bВb (С5-конвертаза альтернативного пути, аналог С5-конвертазы) остается связанной с клеткой-мишенью.
4. С3bВb + фактор Р = стабилизированная С5-конвертаза альтернативного пути.
5. Далее, как и в классическом пути: С5-конвертаза расщепляет С5 (С5=C5a+C5b). С5а уходит в раствор, С5b остается связанный с клеткой-мишенью.
Лектиновый (маннозный) путь
Лектиновый путь это копия классического пути, но на другой элементной базе.
Он использует белок MBL связывающий маннозу. MBL синтезируется преимущественно в печени. В сыворотке крови MBL формирует комплекс с сериновыми протеазами MBL/MASP-I/MASP-II (MBL – аналог C1q, MASP-I – аналог C1r, MASP-II – аналог C1s).
Схема активации:
1. MBL-участок комплекса связывается с маннозными остатками на мембране клетки-мишени.
2. MASP-I и MASP-II активируются и расщепляют белки С2 и C4, образуя С2а и С4b.
3. С4b+С2а=С4bС2а (это С3-конвертаза), продолжает оставаться на поверхности клетки-мишени.
4. С3-конвертаза расщепляет С3 (С3=С3а+С3b). С3а уходит в раствор, С3b остается на клетке-мишени.
5. С3-конвертаза + С3b = С4bС2аС3b (это С5-конвертаза).
6. С5-конвертаза расщепляет С5 (С5=C5a+C5b). С5а уходит в раствор, С5b остается связанный с клеткой-мишенью.
Рисунок из книги Я.Кольмана «Наглядная биохимия»
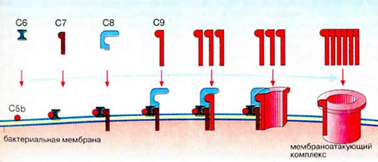
Активация последующих (поздних) компонентов комплимента всех трех путей проходит одинаково по схеме, показанной на рисунке. Как видно, на мембране появляется трубчатая пора. Тем самым нарушается осмотический баланс и в результате тургора бактерия разрушается.
Регуляция системы комплемента
Система комплемента может быть опасной для тканей хозяина, поэтому ее активация должна хорошо регулироваться. Большинство компонентов активны только в составе комплекса, при этом их активные формы способны существовать очень короткое время.
Система комплемента регулируется специальными белками, которые находятся в плазме крови даже в большей концентрации, чем сами белки системы комплемента. Эти же белки представлены на мембранах собственных клеток организма, предохраняя их от атаки со стороны белков системы комплемента.
1.3. Эндогенные пептиды-антибиотики
Пептиды, обладающие активностью антибиотиков, обнаружены в клетках многих эукариот — от растений до человека.
1.4. Интерфероны
ИФН — небольшие белки, синтезируемые в инфицированных вирусом клетках. Индуктором синтеза ИФН служат молекулы двуспиральной РНК. Двуспиральная РНК может быть геномной РНК вирусов или промежуточным продуктом транскрипции у ДНК-содержащих вирусов. В клетках млекопитающих собственных двуспиральных РНК нет.
Другими словами, клетка самостоятельно обнаруживает, что в ней появились двуспиральные РНК, которых в норме не должно быть. И начинает выпускать ИФН, предупреждающие соседние клетки об опасности.
ИФН индуцируют биосинтез в клетке ферментов, нарушающих репликативный цикл вирусов:
— G олигоаденилат синтетаза, полимеризующая АТФ в 2′-5′-олигомеры (в норме нуклеотиды в нуклеиновых кислотах связаны по 3′-5′). Аномальные 2′-5′-олигомеры активируют эндорибонуклеазу, которая расщепляет их и заодно вирусные нуклеиновые кислоты;
— G серинтреониновая киназа Р1 фосфорилирует фактор инициации синтеза белка эукариот eIF-2, что приводит к подавлению трансляции, в том числе и вирусных белков.
1.5. Цитоплазматические рецепторы
Цитоплазматические рецепторы RIG-I и MDA5 узнают не типичные для человека РНК. А именно:
— РНК не имеющие кэпа. Соответственно, на 5′-начале такой РНК находится трифосфат;
— одно- или двуцепочечные РНК с кэпом 0. «Кэп 0» – устаревший тип кэпа — не содержит метилирования первых двух нуклеотидов мРНК. У животных почти не встречается;
— РНК с белком типа VPg на 5′-начале.