
Очистка цитоплазмы от гидрофобных доменов
Общие вопросы
Неправильно синтезированные и свернутые белки запускают цепную реакцию: к открытым гидрофобным доменам начинают прилипать хорошие белки [1]. Рассмотрим, как клетка с этим борется.
Существует 3 вида гидрофобных доменов, временно присутствующих в цитоплазме:
1) ТА-белки (tail-anchored proteins). Это белки с одним трансмембранным доменом, но расположенным не на N-конце белка (под транслокон ретикулума), а на C-конце. Такие белки предназначены для встраивания в мембрану ретикулума.
2) MLP (mislocalization proteins). Это ошибочно локализованные в цитоплазме белки. Например, SRP не распознала слабо выраженный гидрофобный домен, синтез прошел в цитоплазме (вместо ретикулума) и теперь белок засоряет цитоплазму.
3) ERAD. Это обратный процесс: несвернутые белки ретикулума убиквитинилируются и направляются в цитоплазму, в протеасому.
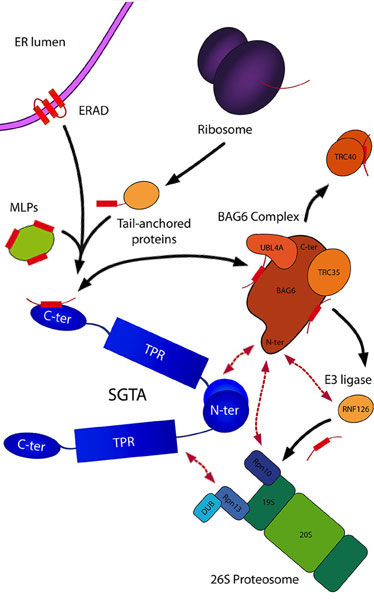
Как видно на рисунке все 3 вида гидрофобных доменов являются субстратами для белковых комплексов SGTA и BAG6.
Представленные белковые комплексы обладают противоположными механизмами действия. Так, SGTA направляет дефектные протеины к деубиквитинированию и, следовательно, к стабилизации, тогда как BAG6 направляет их к полиубиквитинированию и протеасомной деградации. При этом, BAG6 использует убиквитинлигазу RNF126 (E3).
SGTA/BAG6-зависимые циклы убиквитинирования и деубиквитинирования обеспечивают кинетическое равновесие правильно и неправильно свернутых субстратов.
Для поддержания такого равновесия (рисунок) SGTA и BAG6 воздействуют на регуляторные участки протеасомы. SGTA связывается доменом TPR с доменом протеасомного рецептора убиквитина RPN13. BAG6 взаимодействует с внутренним протеасомным рецептором убиквитина RPN10.
1. ТА-белки
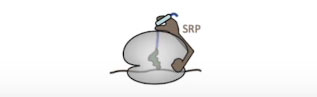
Трансмембранный гидрофобный домен на белке может быть как на N-начале так и на C-хвосте.
1. Если гидрофобный домен находится на N-начале, то он распознается сигнал-распознающей частицей SRP и белок с рибосомой следуют в ретикулум.
2. Если белок синтезировался в цитоплазме, а на его С-конце обнаружился трансмембранный гидрофобный домен (ТА-белок), то SRP его не связывает и после синтеза белок уходит в раствор. А разве SRP не постоянно контролирует гидрофобные домены по всей цепи белка?
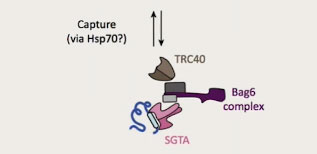
3. Группа шаперонов TRC40, SGTA, Bag6 работают с белком.
SGTA долгое время ассоциировался с шаперонами Hsp70 и Hsp90. Поэтому возможно и их участие в этом процессе.
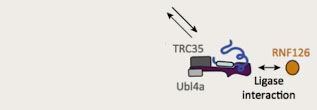
4.1. Если белок признан аварийным, то Bag6 при участии TRC35, Ubl4a взаимодействуют с убиквитин-лигазой RNF126.
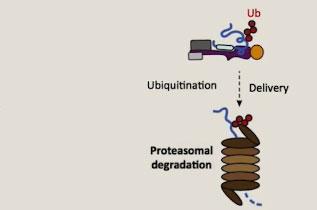
RNF126 убиквитинилирует белок и направляет его в протеасому.
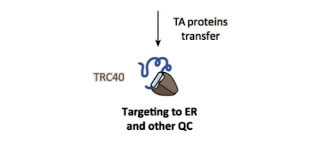
4.2. Если белок идентифицирован как ТА-белок, то в комплексе с TRC40 он направляется к ретикулуму.
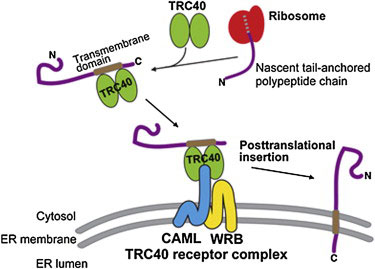
5. Единственный гидрофобный домен белка встраивается в мембрану ретикулума. Функциональный домен белка развернут в сторону цитоплазмы.
2. MLP
1. В норме, SRP перехватывает N-концевой трансмембранный домен.
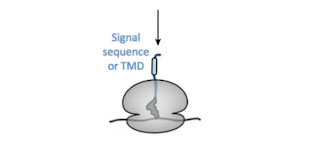
2. SRP пропустила слабовыраженный трансмембранный домен и синтез белка продолжился.
3. В результате, предназначенный для ретикулума белок свободно плавает в цитоплазме.
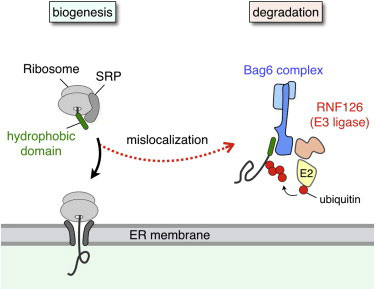
4. Комплекс Bag6 связывает белок.
5. RNF126 (Е3-лигаза) убиквитинилирует белок.
6. В районе протеасомы устанавливается динамический контроль протеолиза. Как отмечалось выше, и SGTA и BAG6 оказывают влияние на регуляторные элементы протеасомы. Их взаимное влияние позволяет MLPs некоторое время избегать протеасомной деградации.
В этом процессе участвует деубиквитиназа UCH37/UCHL5, которая также взаимодействует с регуляторной областью протеасомы RPN13.
3. ERAD
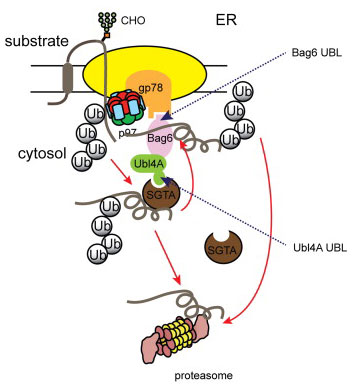
Система ER-ассоциированной деградации (ERAD) удаляет развернутые белки из ретикулума, что способствует выживанию клеток в условиях стресса. В этот период развернутых белков в ретикулуме особенно много.
1. ER-шапероны и лектины, такие как BiP, Os9, EDEM и PDI, распознают неправильно свернутые белки в просвете ретикулума и направляют их к различным мембранным комплексам, содержащим убиквитин-лигазу.
2. В клетках млекопитающих белки-мишени убиквитинилируются трансмембранной убиквитинлигазой gp78 (E3). Она взаимодействует и с E2 и с дислокационной p97-АТФазой соответственно.
3. Белки-мишени перемещаются в цитоплазму (ретротранслокация) с помощью комплекса p97-Ufd1-Npl42. p97 – универсальный белок, он уже участвовал в выводе из ретикулума белков, не успевших за отведенное время свернуться (в калнексиновом цикле).
Что изображено на рисунке: белки снова вытягиваются в нить и протягиваются через пору в цитоплазму?
4. На выходе из поры сформирован комплекс, состоящий из Bag6 и кофакторов Ubl4A и Trc35.
5. После ретротранслокации субстраты ERAD связываются с BAG6, который поддерживает их в растворимом состоянии, предотвращая их агрегацию. Как отмечалось, BAG6 взаимодействует с убиквитинлигазой gp78 (E3) и будет стараться сместить равновесие в пользу деградации белков.
6. SGTA, наоборот, старается дать белкам шанс на спасение. SGTA содержит неканонический убиквитин-связывающий домен, который через нетрадиционный убиквитиноподобный белок Ubl4A связывается с Bag6.
7. Сколько времени будет выделено белкам на попытки правильно уложиться, зависит от соотношения активности BAG6-SGTA.
Убиквитиноподобные белки/домены (UBL)
Представляют собой семейство структурно родственных полипептидов длиной 45–80 аминокислот. Эти белки имеют структурное сходство с убиквитином. Некоторые белки UBL могут связываться с субстратами аналогично убиквитину.
Список литературы и интернет-сайтов:
1. Курс видеолекций по молекулярной биологии Д.Никитина, МГУ, 2018 — https://www.youtube.com/watch?v=j_Ks-t5PuZE&list=PLNaLMqSph0LaBiFtJ9YD1FT-miq8L9cDk&index=2&t=0s.