
Сборка мембран
Липиды
Классификация липидов сложна, так как в класс липидов входят вещества разнообразные по своему строению. Их объединяет только одно свойство – гидрофобность. В простейшем случае можно использовать следующую классификацию:
а) Простые липиды (из спирта и жирных кислот):
— воска (из одноатомных и двухатомных спиртов);
— глицериды (из трехатомного спирта глицерина).
б) Сложные липиды (из спирта, жирных кислот, дополнительных групп):
— фосфолипиды, глицерофосфолипиды (фосфат);
— сфинголипиды (спирт сфингозин);
— гликолипиды, гликосфинголипиды;
— стероиды, сульфолипиды, аминолипиды;
— предшественники и производные липидов: жирные кислоты, спирты, альдегиды жирных кислот, углеводороды, жирорастворимые витамины и гормоны.
Липиды клеточных мембран
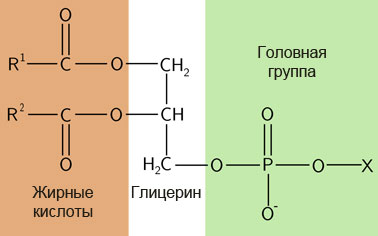
В клеточных мембранах используется несколько классов из общей массы липидов.
В основе их структуры – спирт.
Спирты
Спирты содержат одну/несколько гидроксильных групп −OH, связанных с атомом углерода. В таком соединении −OH удерживается прочно и не диссоциирует, в отличие от оснований.
Со спиртами эфирными связями соединены головная группа и жирные кислоты.
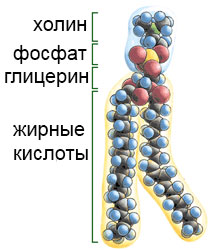
Головные группы
Головные группы мембранных липидов всегда полярные – т.к. они должны удерживаться на границе с водой. Но они могут быть цвиттерионными, имеющими как отрицательный, так и положительный заряд.
Также головные группы различаются по размеру, например, большие из полисахаридов.
Жирные кислоты
В состав мембранных липидов включены в основном насыщенные и мононенасыщенные (одна двойная связь, один перегиб в цепи) жирные кислоты. Длина цепей может варьироваться от 14 до 26 атомов углерода [1].
У человека жирные кислоты характеризуются следующими общими свойствами: четное число углеродных атомов в цепи и отсутствие разветвлений цепи.
На рисунке – фосфатидилхолин.
Структура клеточных мембран
Липиды мембран клеток различаются по ряду свойств:
— полярные/нейтральные (заряд скомпенсирован);
— плотные/рыхлые (например, если жирные кислоты мононенасыщенные, т.е. содержат одну двойную связь и один перегиб в цепи);
— тонкие/толстые, в зависимости от длины ацильных цепей жирных кислот.
В разных органеллах используются разные из этих свойств:
— в эндоплазматическом ретикулуме — тонкий бислой, рыхлая липидная упаковка, нейтральный заряд цитоплазматической поверхности;
— плазматическая мембрана имеет толстый бислой, плотную упаковку липидов, отрицательный заряд цитоплазматической поверхности.
Трансмембранные домены белков (TMD) адаптированы под разную толщину мембран и различаются по толщине (20 и 25 аминокислот соответственно) [2].
Помимо неравномерного распределения липидов между органеллами, многие органеллы имеют отличающиеся по составу листы двухслойной мембраны.
Внутри одной органеллы мембрана также может быть неоднородна. При участии сфинголипидов организуются упорядоченные липидные домены (плоты, рафты).
1. Поступление липидов с пищей
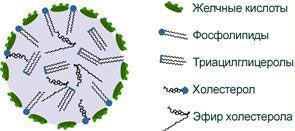
1. Соли желчных кислот способствуют грубому разделению нерастворимых пластов пищевых жиров на эмульгированные жировые капли (рисунок).
2. На поверхности капель, под воздействием липазы кишечника пищевые жиры распадаются на глицерин и жирные кислоты.
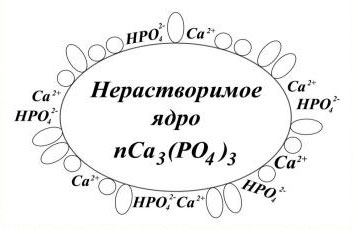
3. Из жировых капель, при участии энтероцитов формируются более мелкие капли — мицеллы с гидрофильной поверхностью и гидрофобным ядром. В состав мицелл входят жирные кислоты, желчные кислоты, глицерин, фосфат кальция, молекулы белков муцинов и стазеринов (овалы на рисунке).
4. Компоненты мицелл диффундируют в клетки эпителия кишечника и попадают в гладкий эндоплазматический ретикулум. Желчные кислоты на данном этапе пищеварения почти не всасываются и остаются в просвете кишечника.
5. Глицерол и короткие жирные кислоты (не более 10 атомов углерода) быстро покидает энтероциты и уходят в кровь.
6. В гладком эндоплазматическом ретикулуме проходит ресинтез – связывание жирных кислот со спиртами – глицеролом или холестеролом.
7. После ресинтеза фосфолипиды, триацилглицеролы, холестерол и его эфиры упаковываются в транспортные формы липидов – липопротеины. Энтероциты кишечника формируют два вида липопротеинов – хиломикроны (в основном) и липопротеины высокой плотности (ЛПВП, малое количество).
8. В дальнейшем липопротеины попадают в лимфатическую систему, а затем уже в кровь.
2. Формирование липопротеинов
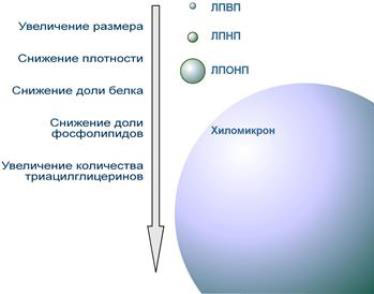
Липопротеины представляют собой круглые частицы, в состав которых входят эфиры холестерола и триглицериды. Они покрыты оболочкой из белков, гликолипидов и фосфолипидов.
Описано 4 группы липопротеинов, которые различаются по плотности и составу структурных белков: хиломикроны (ХМ), липопротеины очень низкой плотности (ЛПОНП), липопротеины низкой плотности (ЛПНП), липопротеины высокой плотности (ЛПВП) [3].
ЛПВП обладают максимальной среди липопротеинов плотностью из-за высокого уровня белка относительно липидов, хиломикрон — минимальной.
Функции липопротеинов:
1. Перенос к клеткам тканей и органов: насыщенных и мононенасыщенных жирных кислот в составе триацилглицеролов (ТАГ); полиненасыщенных жирных кислот в составе эфиров холестерола; холестерола; фосфолипидов.
2. Удаление избытка холестерола из мембран клеток.
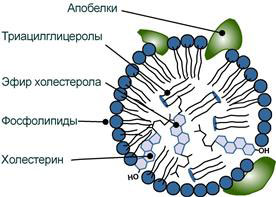
На рисунке — схема строения любого транспортного липопротеина (ЛП). Как видно, ЛП имеет ту же структуру, что и мицеллы: гидрофильная поверхность с гидрофобным ядром.
Гидрофильность липидов поверхностного слоя призвана обеспечить растворимость липопротеинов в плазме крови. «Ядро» формируют неполярные эфиры холестерола (ХС) и триацилглицеролы (ТАГ).
2.1. Хиломикрон
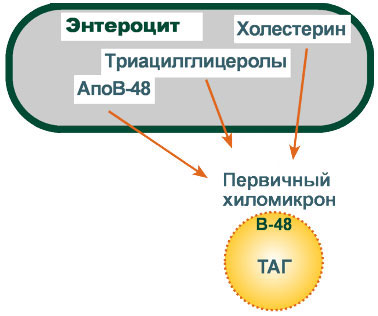
Транспорт триацилглицеролов от кишечника к тканям (экзогенные ТАГ) осуществляется в виде хиломикронов (ХМ).
1. В клетках слизистой тонкого кишечника происходит формирование незрелых первичных ХМ, имеющих только апоВ-48 [4].
2. Из-за большого размера первичные ХМ не проникают напрямую в кровеносное русло и эвакуируются через лимфатическую систему, попадая в кровь через грудной лимфатический проток.
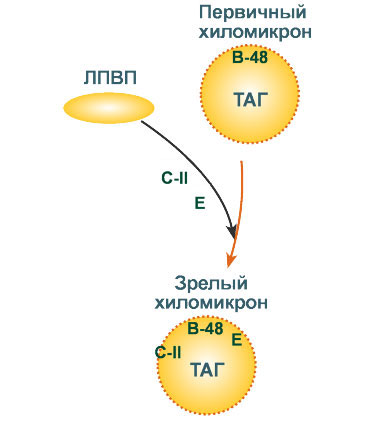
3. В крови ХМ взаимодействуют с ЛПВП и приобретают от них апоС-II и апоЕ, образуя зрелые формы.
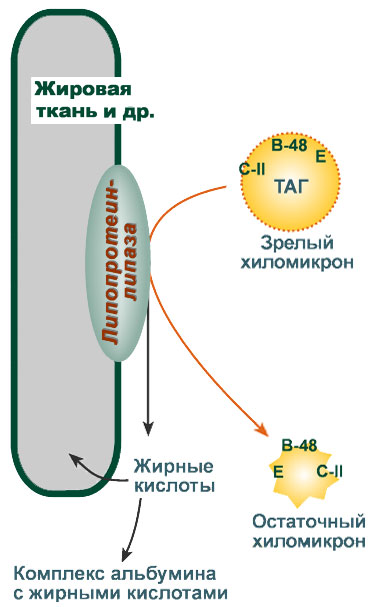
4. На эндотелии капилляров жировой ткани, легких, миокарда, селезенки, костного мозга и некоторых других тканей находится фермент липопротеинлипаза (ЛПЛ). Белок апоС-II активирует ЛПЛ и она отщепляет боковые жирные кислоты от ТАГ в положении 1 и 3. В результате в ХМ накапливаются моно- (МАГ) и диацилглицеролы (ДАГ).
Освободившиеся жирные кислоты проникают непосредственно в клетки данной ткани или, связываясь с альбумином, разносятся по организму. В результате количество ТАГ в хиломикроне резко снижается, образуются остаточные ХМ.
5. Находясь в плазме крови, хиломикроны продолжают общаться с ЛПВП, отдавая им часть своих МАГ и ДАГ и получая взамен эфиры ХС.
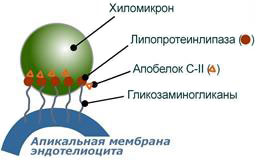
На рисунке — взаимодействие хиломикрона и липопротеинлипазы.
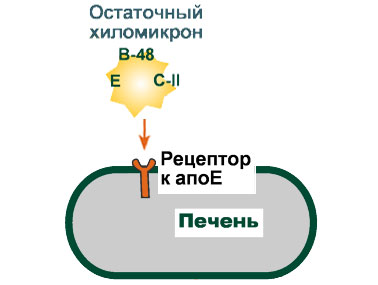
6. Остаточные ХМ переходят в гепатоциты где происходит полный распад их структуры.
2.2. ЛПОНП
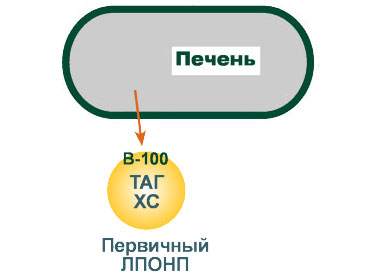
Если не учитывать, что ЛПОНП и ХМ формируются в разных органах, то в целом они имеют сходную функцию. И те и другие ответственны, в первую очередь, за транспорт жирных кислот в составе ТАГ.
Транспорт триацилглицеролов от печени к тканям (эндогенные ТАГ) осуществляется в виде липопротеинов очень низкой плотности.
1. В печени происходит синтез ТАГ из пищевых липидов, МАГ и ДАГ остаточных ХМ, из липидов, синтезируемых из глюкозы.
2. Из полученных компонентов гепатоциты формируют первичные ЛПОНП, которые содержат только апоВ-100.
По другим данным часть ЛПОНП формируется в клетках слизистой тонкого кишечника.
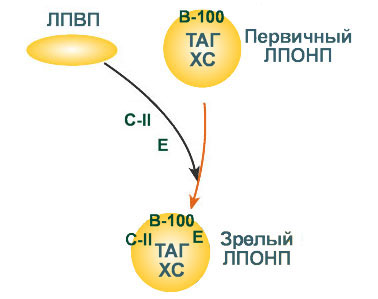
3. В крови первичные ЛПОНП взаимодействуют с ЛПВП и приобретают от них апоС-II и апоЕ, образуя зрелые формы.
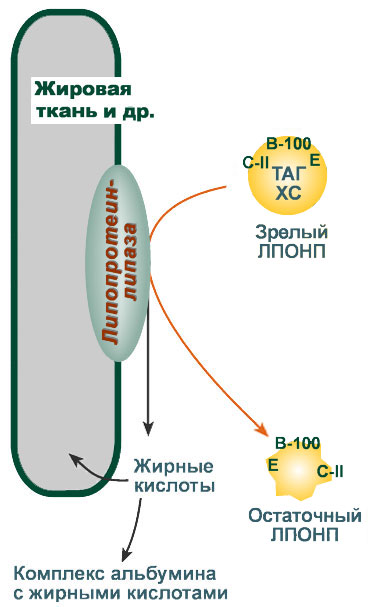
4. ЛПОНП взаимодействуют с липопротеинлипазой эндотелия кровеносных сосудов. Белок апоС-II активирует липопротеинлипазу (ЛПЛ).
В результате работы ЛПЛ снижается количество ТАГ и нарастает доля МАГ и ДАГ. Освободившиеся жирные кислоты проникают непосредственно в клетки данной ткани или, связываясь с альбумином, разносятся по организму.
Формируются остаточные ЛПОНП (по-другому липопротеины промежуточной плотности, ЛППП).
5. Находясь в плазме крови, ЛПОНП продолжают общаться с ЛПВП, отдавая им часть своих МАГ и ДАГ и получая взамен эфиры ХС.
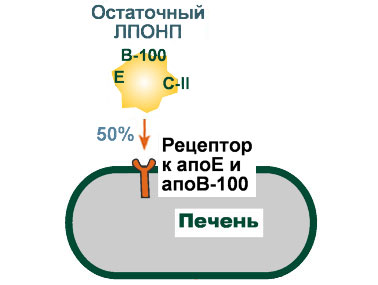
6. Часть остаточных ЛПОНП (50х50) переходят в гепатоциты и полностью распадаются. Остальные — остаются в плазме крови и превращаются в ЛПНП.
2.3. ЛПНП
ЛПНП и ЛПВП, в отличие от ХМ и ЛПОНП ответственны, в первую очередь, за транспорт свободного холестерина и жирных кислот в составе его эфиров.
ЛПВП, он же «хороший холестерин», собирает излишки холестерина из плазмы крови и с поверхности клеток. ЛПНП, он же «плохой холестерин», наоборот снабжает клетки холестерином. Т.о. ЛПВП предотвращают накопление холестерина в клетках, а ЛПНП обеспечивает холестерином клетки при увеличении потребности в нем.
ЛПНП образуются в клетках печени и в плазме крови из ЛПОНП. Как и у ЛПОНП его основным апобелком является апоВ-100. В результате перехода ЛПОНП-ЛПНП, относительное содержание ТАГ в частице заметно падает, а холестерина растет. ЛПНП легко отдает холестерин.
ЛПНП разрушаются в лизосомах клеток печени, кишечника, жировой ткани почек.
2.4. ЛПВП
ЛПВП формируются в печени de novo, в плазме крови при распаде ХМ, некоторое количество в стенке кишечника. ЛПВП способны собирать излишки холестерина из плазмы крови и с поверхности клеток. Также они способны отдавать клеткам часть своей фосфолипидной оболочки.
Основным апобелком ЛПВП является апо А1, присутствуют апоЕ и апоСII.
ЛПВП разрушаются в лизосомах клеток печени, кишечника, жировой ткани почек.
3. Депонирование жиров
Жиры депонируются в специализированных клетках жировой ткани – липоцитах. Жиры поступают из двух источников:
— из липопротеинов;
— синтезируются из глюкозы в самих жировых клетках.
4. Мобилизация жиров
Мобилизация (привлечение) депонированных ранее жиров происходит путем их гидролиза до жирных кислот и глицерина липазами жировых клеток.
1. При голодании ХМ и ЛПОНП в крови отсутствуют. Данному состоянию обычно сопутствует гипогликемия. Для ее компенсации из поджелудочной железы секретируется глюкагон.
2. Под влиянием глюкагона и других гормонов в жировых депо активируется расщепление ТАГ до жирных кислот и глицерола (липолиз).
3. Жирные кислоты поступают в кровь, соединяются с альбуминами и транспортируются по кровеносному руслу. Глицерин транспортируется в печень.
4. Часть жирных кислот печень преобразует в глюкозу.
5. Синтез липидов в клетках
В мембранах эукариот обнаружены три основных класса липидов: глицерофосфолипиды (GPL), сфинголипиды и стерины. Соответственно, клетка следит за их наличием и синтезирует их при необходимости.
Основным местом синтеза липидов является эндоплазматический ретикулум (ER).
Покинув ER и прибыв на место назначения, липиды могут оставаться в виде структурных соединений или могут подвергаться дальнейшим биосинтетическим модификациям.
5.1. Глицерофосфолипиды (GPL)
Глицерофосфолипиды представляют собой самый распространенный класс липидов в клетках млекопитающих. За счет разнообразия цепей жирных кислот, клетка может содержать сотни различных молекул фосфолипидов [5].
В зависимости от головной группы различают фосфатидилхолин, фосфатидилэтаноламин, фосфатидилсерин.
На рисунке – общая схема глицерофосфолипидов. Основа липида – спирт глицерин. Головные части и жирные кислоты варьируются в широких пределах.
Синтез глицерофосфолипидов полностью происходит в ER.
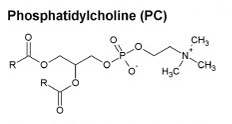
Фосфатидилхолин (PC)
PC — самый распространенный, составляет примерно половину всех клеточных фосфолипидов [6].
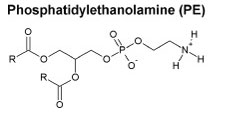
Фосфатидилэтаноламин (PE)
PE — второй по распространенности фосфолипид в мембранах эукариот. Составляет 17–38 мол.% от общего количества фосфолипидов.
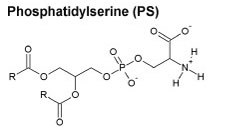
Фосфатидилсерин (PS)
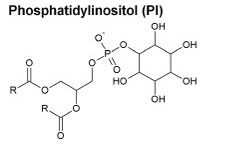
Фосфатидилинозитол (PI)
5.2. Сфинголипиды
Сфинголипиды также обладают комбинаторной склонностью к созданию разнообразия за счет различных основных цепей церамидов и, прежде всего, более 500 различных углеводных структур, которые составляют головные группы гликосфинголипидов.
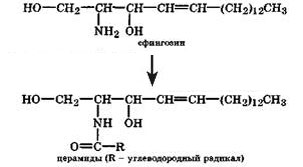
1. Сборка сфинголипидов начинается в ER с синтеза церамида — предшественника всех сфинголипидов.
2. Затем церамид поступает в аппарат Гольджи, где из него синтезируются сфингомиелин и гликосфинголипиды. Синтез гликосфинголипидов осуществляется при участии адапторного белка FAPP2.
На рисунке: к двухатомному спирту сфингозину, уже имеющему в своем составе цепь жирной кислоты, добавили вторую жирную кислоту (R) – получили церамид.
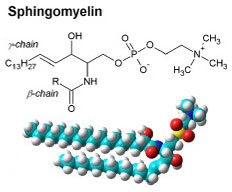
Сфингомиелин (SM)
Сфингомиелин представляет собой единственный фосфолипид человека, основа которого не включает глицерин. Составляет 23 мол.% от общего количества фосфолипидов.
В структуру его молекулы входят: спирт сфингозин, головная группа содержащая фосфат, 2 жирные кислоты (одна — вариабельная, обозначена R; вторая – «встроенная» в составе сфингозина).
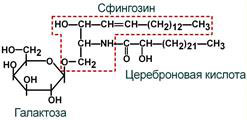
Гликосфинголипиды (GSL)
Гликосфинголипиды являются относительно второстепенными компонентами мембран, но доминирующие молекулярные разновидности этого класса липидов имеют очень длинные N-ацилжирные кислоты.
GSL содержат церамид, а также один или несколько остатков сахаров. Двумя простейшими соединениями этой группы являются галактозилцерамид (GalCer, на рисунке) и глюкозилцерамид (ClcCer).
Большинство синтезированных SM и GSLs перемещаются в транспортных пузырьках от сети транс-Гольджи к плазматической мембране, где они размещаются на внеклеточном листке.
5.3. Стерины
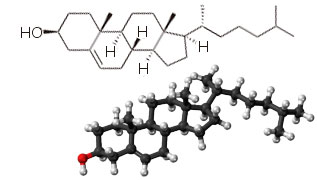
Мембраны клеток млекопитающих содержат в основном один стерол, а именно одноатомный спирт холестерол. Более известное название холестерола – холестерин.
Клетка может синтезировать холестерин de novo или принять из кровяного русла готовый. Синтез осуществляется в ER из любых веществ, при распаде которых образуется ацетил-КоА. К ним относятся углеводы, жирные кислоты, аминокислоты, глицерин.
Более 80% холестерина синтезируется в печени, около 10% в стенках кишечника, а также в коже, других органах и тканях. За сутки образуется до 2,5 г. холестерина, с пищей поступает около 0,5 г.
Необходимый уровень синтеза контролируется ТФ семейства SREBP, который также регулирует активность гена LDLR (рецептор к ЛПНП).
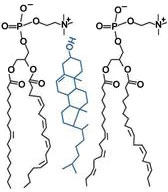
Уплотняющая роль холестерина в клеточных мембранах
Холестерин придает мембране жесткость, занимая свободное пространство между гидрофобными хвостами липидов и не позволяя им изгибаться. Поэтому мембраны с малым содержанием холестерина более гибкие, а с большим — более жесткие и хрупкие.
Структурная роль холестерина в комплексе Гольджи
Холестерин увеличивает толщину липидных бислоев. В комплексе Гольджи это особенно заметно, т.к. в цистернах концентрация холестерина и толщина мембран постепенно увеличивается по направлению к транс- стороне от 5 мол.% как в ER до 40 мол.% как в плазматической мембране. Есть сообщения, что это приводит к самостоятельной рассортировке по цистернам резидентных ферментов с короткими и длинными трансмембранными доменами (TMD) [7].
Список литературы и интернет-сайтов:
2. Holthuis, J., Menon, A. Lipid landscapes and pipelines in membrane homeostasis. 2014.
3. https://biokhimija.ru/lipidy/transport-lipidov-krovi.html.
4. https://biokhimija.ru/lipidy/transport-tag.html.
5. Blom, T., Somerharju, P. et al. Synthesis and Biosynthetic Trafficking of Membrane Lipids. 2011.
6. Yang, Y., Lee, M. et al. Phospholipid subcellular localization and dynamics. 2018.
7. Simons, K., Sampaio, J., L. Membrane Organization and Lipid Rafts. 2011.